生物多样性保护技术:从实验室到野外的落地偏差
上个月在南京牛首山做样线调查的时候,碰到某高校团队装的一批红外相机。装在离兽道垂直高度1.2米的位置,镜头刚好对着正午的直射阳光,存了三个月的素材,全是过曝的光斑,连个獐子的影子都没拍着。
负责安装的学生蹲在地上翻素材,脸涨得通红。他说这个高度是照着核心期刊文献里的最优参数定的,从来没人提醒他,南京盛夏的太阳角度,会在那个位置刚好把整个镜头盖满。
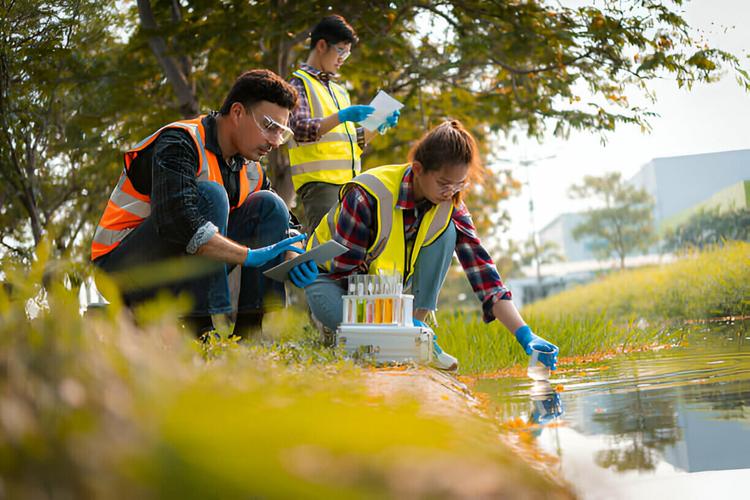 太湖自然岸带eDNA水体采样野外作业场景
还有人做过对比试验,在同一条溪流的上下游各采一份eDNA样本,下游的样本能测出上游两公里外的两栖类DNA——因为水流会把上游冲下来的动物尸体、排泄物的DNA一路带下去。你如果只靠eDNA的结果做物种分布地图,等于把"路过的DNA"当成了"定居的种群"。
真的分不出来。
没有办法完全溯源每一段DNA的来源、时间、对应的个体状态。你能知道这个地方曾经有过某种生物,却没法确定它现在是不是真的在这生活。
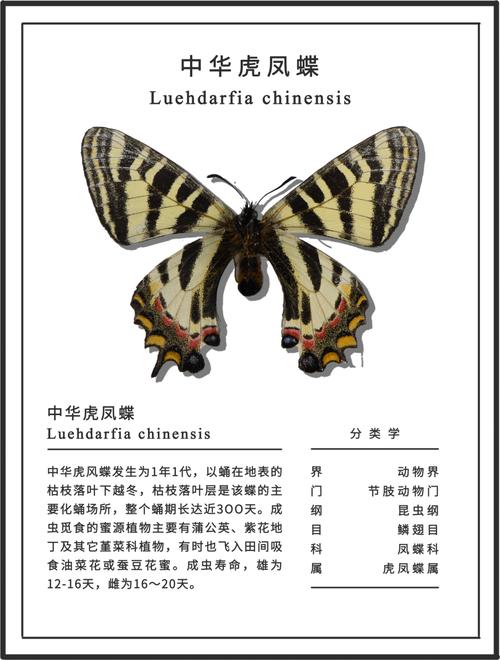 南京紫金山中华虎凤蝶栖息地修复监测样地
说实在的,真的没必要把修复技术搞成一套套的参数表,对着数值打勾就算完成任务。你选的参数再精准,没把整个生态系统的联动关系考虑进去,最后都是在做表面功夫。
识别技术的假阳性陷阱
现在聊生物多样性保护,绕不开环境DNA(eDNA)、AI声纹识别、红外相机智能识别这几类主流的监测手段。很多人觉得这些技术能把人从繁重的野外调查里解放出来,甚至能代替传统的样线、样方调查。 实际用起来才知道,坑多到数不过来。 就说eDNA技术吧,原理并不复杂——从水体、土壤甚至空气里收集游离的生物DNA片段,和现有数据库匹配,就能反推出采样区域里存在哪些物种。这个方法在封闭的实验室环境里测,准确率能到90%以上。 可到了开放的野外环境,干扰源根本防不住。之前在太湖做底栖生物调查的时候,团队用eDNA测出了大量养殖区域的鲤鱼DNA片段,一开始以为是野生种群扩散到了自然岸带,顺着采样点往上游找了三公里,才发现采样点离一个养殖塘退水口不到两百米——塘里换出来的水直接排进了湖岸带,这些DNA根本不是野生种群的。太湖自然岸带eDNA水体采样野外作业场景
还有人做过对比试验,在同一条溪流的上下游各采一份eDNA样本,下游的样本能测出上游两公里外的两栖类DNA——因为水流会把上游冲下来的动物尸体、排泄物的DNA一路带下去。你如果只靠eDNA的结果做物种分布地图,等于把"路过的DNA"当成了"定居的种群"。
真的分不出来。
没有办法完全溯源每一段DNA的来源、时间、对应的个体状态。你能知道这个地方曾经有过某种生物,却没法确定它现在是不是真的在这生活。
栖息地修复的参数错配
很多修复方案的设计逻辑,是从实验室的最优生长参数出发的。比如给某种濒危兰科植物做回归引种,先在实验室里测出来最适合的土壤pH值、腐殖质含量、光照强度,然后找一块刚好符合这些数值的林地,把苗种下去,就等着种群自我维持。 结果往往是死一大半。 所有的栖息地修复技术,都不能脱离当地已经存在的种间关系网络单独评估。之前紫金山做兰科植物回归的时候,一开始严格按照实验室参数选了样地,种下去的春兰、蕙兰存活率不到30%。后来仔细查了样地的昆虫群落,才发现这个区域的传粉蜂类数量不到临近原生林的1/5——就算土壤、光照全合适,没有传粉者,植物开了花也结不了籽,种群根本没法自我更新。 还有更早的中华虎凤蝶修复项目,一开始只按文献要求种够了寄主植物杜衡,结果蝴蝶迁飞过来之后,产卵量低得可怜。后来补种了它偏好的蜜源植物千里光,第二年的产卵量直接翻了三倍。南京紫金山中华虎凤蝶栖息地修复监测样地
说实在的,真的没必要把修复技术搞成一套套的参数表,对着数值打勾就算完成任务。你选的参数再精准,没把整个生态系统的联动关系考虑进去,最后都是在做表面功夫。